Homem-macaco dá adeus ao gradualismo darwinista

terça-feira, abril 19, 2022

Homem-macaco dá adeus ao gradualismo darwinista

Günter Bechly

6 de setembro de 2019, 4:47 AM


Alguns dias atrás, uma nova descoberta paleontológica sensacional fez manchetes em todo o mundo. Após 15 anos de pesquisa e a recuperação de 12.600 fósseis, incluindo 230 restos de hominídeos (Leakey Foundation 2019), finalmente um crânio bastante completo foi encontrado e descrito de Australopithecus anamensis, que é o representante mais antigo e primitivo dos australopitecinos, vivendo 4.2-3.9 milhões de anos atrás. Foi geralmente considerado o ancestral direto da espécie de Lucy, Australopithecus afarensis, que viveu na mesma região 3.8-2.9 milhões de anos atrás. A primeira espécie era conhecida anteriormente apenas por alguns fragmentos. Agora podemos finalmente dar-lhe um rosto. Na verdade, esse rosto se parece muito com um macaco, com uma pequena caixa craniana do tamanho de um chimpanzé e uma mandíbula saliente, mas isso não é a coisa realmente interessante nessa descoberta. Eu voltarei a isso em um momento.


O pano de fundo da história

O crânio fóssil foi descoberto em 2016 por um pastor de cabras nativo na região de Afar, na Etiópia, em sedimentos sob uma pilha de esterco de cabra. Foi escavado e descrito pelo famoso paleoantropólogo Haile-Selassie, do Museu de História Natural de Cleveland, e seus colegas (Haile-Selassie et al. 2019). A história vívida da descoberta está disponível com mais detalhes no site da National Geographic (Greshko 2019). Devido à feliz circunstância de que as camadas de cinzas vulcânicas foram depositadas diretamente abaixo e acima das camadas de onde veio o crânio, esse fóssil pode ser datado com muita precisão em uma idade de 3.8 milhões de anos por métodos radiométricos (Saylor et al. 2019). Assim, é 100.000 anos mais novo do que os restos mais antigos anteriores desta espécie. No entanto, este crânio, apelidado de MRD devido ao seu número de coleção, é o crânio de australopitecino mais antigo já encontrado. Ele também está entre os poucos relativamente completos. Representa uma descoberta verdadeiramente notável de tremenda importância científica, que já está “preparada para se tornar outro ícone célebre da evolução humana” (Spoor 2019).

“O MRD tem uma mistura de características faciais e cranianas primitivas e derivadas que eu não esperava ver em um único indivíduo”, de acordo com seu descobridor, Haile-Selassie (Max Planck Society 2019). Isso significa que temos aqui outro fóssil que não satisfaz as expectativas darwinistas e não se encaixa em nenhuma árvore filogenética sem grandes incongruências na distribuição de características. Mas mesmo isso não é a coisa realmente importante sobre esta descoberta. Então, qual é a verdadeira surpresa? A grande surpresa é que A. afarensis não pode mais ser derivado pela transição gradual de espécies anagenéticas de A. anamensis, como a maioria dos especialistas ainda acreditava até poucos dias atrás. Como assim?

Como o novo crânio mostrou pela primeira vez como era o osso frontal de A. anamensis e como ele diferia do de A. afarensis, os cientistas puderam finalmente determinar as afinidades específicas de um osso frontal isolado (conhecido como “Belohdelie frontal ”) que foi descoberto em 1981, também na região de Afar da Etiópia (Asfaw 1987). Acabou por pertencer a A. afarensis, embora seja datado de forma confiável em 3.9 milhões de anos, portanto, 100.000 anos mais velho que o novo crânio de A. anamensis. Isso implica que ambas as espécies se sobrepuseram por um período considerável. Consequentemente, A. anamensis não pode ter se transformado e dissolvido em A. afarensis.

Tal evolução anagenética por transições graduais de espécie para espécie (sem eventos de ramificação) é realmente prevista pela teoria de Darwin. Portanto, devemos esperar encontrar alguma evidência fóssil para esse processo crucial. Mas essa evidência acabou sendo elusiva (veja abaixo), e o caso da suposta transição de A. anamensis para A. afarensis foi “um dos casos mais fortes de anagênese no registro fóssil” (Melillo citado em Marshall 2019, Kimble et al. 2006, Haile-Selassie 2010). Este caso mais forte evaporou-se agora, e não era apenas o caso mais forte, mas também o último caso, como explicarei em breve.


Infeliz e cético


Alguns cientistas, é claro, estão descontentes com essa conclusão e permanecem céticos, referindo-se ao pequeno tamanho da amostra de apenas dois espécimes (Price 2019). No entanto, pequenas amostras são a norma em paleoantropologia, e também há mais evidências que apoiam essa conclusão particular e contradizem até mesmo a alternativa de que A. afarensis se ramificou da população local de A. anamensis por especiação cladogenética, enquanto outras populações das espécies-tronco “sobreviveram” a este evento de especiação. Na verdade, alguns caracteres do crânio de A. anamensis, especialmente os ossos da face muito pronunciados, não se encaixam bem com uma relação ancestral com A. afarensis, e sugerem que A. anamensis poderia ser ancestral de A. africanus e do robusto australopitecinos (gênero Paranthropus). Embora Haile-Selassie et al. (2019) ainda apoiem a colocação tradicional de A. anamensis, eles também mencionam que “o fato de o MRD compartilhar algumas características morfológicas neurocranianas e faciais com táxons mais jovens, como A. africanus e Paranthropus – embora considerado aqui como mais provável de ter sido causado pela evolução paralela - vale a pena uma investigação mais aprofundada no futuro, pois pode ter uma influência considerável sobre a origem do A. africanus e sua relação com o A. afarensis.” Na verdade, estudos filogenéticos recentes de relacionamentos de hominídeos fósseis produziram árvores bastante diferentes, das quais algumas têm A. africanus como um grupo irmão de Paranthropus (por exemplo, Dembo et al. 2016). A lacuna temporal entre A. africanus e A. anamensis seria perfeitamente preenchida pelo esqueleto “Little Foot” de 3.67 milhões de anos de Australopithecus prometeus como um elo adequado. Assim, há evidências consideráveis para excluir A. anamensis não apenas da linhagem de A. afarensis, mas também de nosso próprio gênero Homo. Juntamente com a evidência de uma sobreposição temporal com A. afarensis, podemos dizer adeus com segurança a esta vitrine fóssil mais forte de anagênese.


Sem exagero aqui


Mas é claro que o título deste artigo seria um exagero se não houvesse mais a dizer sobre a falta de apoio fóssil para especiação gradualista em geral e anagênese em particular. Como mencionei acima, essa evidência fóssil provou ser muito elusiva. Tanto que você encontrará apenas três exemplos proeminentes nos livros didáticos (A. anamensis, caracóis de água doce Steinheim e foraminíferos Globorotalia). Um desses três exemplos acabamos de descobrir que está obsoleto, e os outros dois você encontrará refutados abaixo. Mas primeiro vamos esclarecer por que o gradualismo e sua falta de apoio empírico são uma questão tão importante.

A teoria da evolução de Darwin prevê direta e necessariamente um padrão gradual de transições de espécie para espécie bem graduadas para escalar “o monte improvável”, para usar a famosa metáfora de Richard Dawkins. Esta não é de forma alguma uma visão obsoleta do tempo de Darwin, uma vez que Dawkins (2009) deixou muito claro que “a evolução não é apenas um processo gradual como uma questão de fato; tem que ser gradual se for para fazer algum trabalho explicativo.” Assim, o gradualismo não é apenas um componente secundário opcional dessa teoria. Se o gradualismo é falso, então o darwinismo também é falso. O registro fóssil oferece uma janela única para o passado que nos permite verificar se o padrão gradual esperado pode realmente ser encontrado na natureza. O próprio Darwin (1859) estava bem ciente de que o registro fóssil não apoia sua previsão:

Por que, se as espécies descenderam de outras espécies por gradações finas, não vemos em toda parte inúmeras formas de transição?... Por que não as encontramos incrustadas em números incontáveis na crosta da terra?... O número de variedades intermediárias, que existiram anteriormente , [deve] ser verdadeiramente enorme, … Por que então não é toda formação geológica e todo estrato cheio de tais ligações intermediárias? A geologia certamente não revela nenhuma cadeia orgânica tão finamente graduada; e esta, talvez, seja a objeção mais óbvia e grave que pode ser feita contra minha teoria.


Isso certamente é verdade para as principais novidades da história da vida (macroevolução), que geralmente não apresentam um desenvolvimento gradual de novos planos corporais, mas aparecem rapidamente durante eventos “explosivos” abruptos (Bechly & Meyer 2017). Mas, também é verdade na escala menor de transições de espécie para espécie (microevolução). Darwin ainda podia se referir razoavelmente ao registro fóssil fragmentário e pouco conhecido. Ele esperava que, com o tempo, novas descobertas paleontológicas pudessem resolver esse problema para sua teoria. No entanto, mesmo 160 anos depois, isso não aconteceu, apesar do conhecimento muito expandido que temos hoje e uma “completude do registro fóssil que é bastante alta para muitos grupos de animais” (Foote & Sepkoski 1999, Benton et al. 2000). Portanto, o apelo de Darwin a uma subamostragem do registro fóssil para explicar a ausência de evidências do gradualismo filético não é mais sustentável. (Veja também meu vídeo, “How Complete is the Current Fossil Record?”)


Estase é dado 


É claro que os paleontólogos estavam bem cientes desse problema de que o aparecimento abrupto de novas espécies é a norma; ou, em outras palavras, no registro fóssil, “estase é dado” (Gould 1991). Este enigma levou dois paleontólogos americanos Niles Eldredge e Stephen Jay Gould a propor seu famoso modelo de “equilíbrio pontuado” (Eldredge & Gould 1972). Este modelo é muitas vezes mal interpretado como advogando a evolução saltacional, o que explicitamente não faz. É apenas uma versão especial do gradualismo que limita a evolução incremental a uma pequena subpopulação isolada e a comprime em um período de tempo mais curto. Isso sugere que, em vez de evolução gradual contínua (gradualismo filético), na realidade fases curtas de mudança evolutiva muito rápida foram geralmente seguidas por longos períodos de estase morfológica: “Novas espécies surgem muito rapidamente em pequenas populações locais isoladas perifericamente por especiação alopátrica, o que automaticamente resulta em aparentes lacunas no registro fóssil, porque novas espécies não evoluem na área de seus ancestrais” (Eldredge & Gould 1972). Isso está postulando um processo que é quase impossível de se observar no registro fóssil, forjando uma hipótese completamente ad hoc para explicar evidências conflitantes inconvenientes. A introdução ao famoso artigo de Eldredge e Gould conclui com uma admissão reveladora: “Esta ideia, que a teoria dita o que se vê, não pode ser fortemente afirmada.” Eldredge e Gould sugeriram o equilíbrio pontuado como um fenômeno geral, mas nunca foi aceito como tal dentro da biologia evolutiva convencional. Muitos darwinistas o rejeitaram e outros o consideraram nada mais que uma “pequena ruga na superfície da teoria neodarwiniana” (Dawkins 1986). De qualquer forma, mesmo que “punk-eek” possa explicar alguns casos de aparente aparecimento abrupto de novas espécies, certamente não pode explicar a ausência geral de qualquer evidência de evolução filética gradual em todo o registro fóssil.


Sem surpresa alguma, a admissão implícita do fracasso empírico de Eldredge e Gould não encontrou uma aceitação entusiástica entre os biólogos evolucionistas, que, em vez disso, tentaram desesperadamente encontrar pelo menos alguma evidência do gradualismo darwiniano no registro fóssil, embora dificilmente com sucesso. Gingerich (1983) reconheceu que a pouca evidência fóssil que tem sido usada para apoiar a hipótese darwinista do gradualismo filético “poderia ser um artefato da média do tempo” e “as distribuições de taxa ainda não fornecem um teste definitivo dos dois modelos”. Então, que pouca evidência foi encontrada?


Atualizem os livros didáticos


A maioria dos poucos casos documentados de gradualismo filético veio de microplâncton marinho fóssil em sedimentos do fundo do mar (Ozawa 1975, Dzik & Trammer 1980, Malmgren & Kennett 1981, Benton & Pearson 2001, Pearson & Ezard 2014). Muitos desses casos mostram apenas pequenas variações dentro das espécies e não entre as espécies. Além disso, dados mais recentes sugerem que a diversidade críptica deve ser levada em consideração para dar sentido aos padrões observados de unidirecionalidade e taxas de evolução da linhagem (Alizon et al. 2008). De longe, o exemplo mais proeminente veio dos foraminíferos marinhos planctônicos, pequenos protistas com conchas muito diversas e bonitas. O caso em questão foi a proposta de transição gradual em 500.000 anos entre as espécies extintas Globorotalia plesiotumida para Globorotalia tumida, ambas encontradas em sedimentos marinhos do Mioceno. Esta história você ainda encontra em muitos livros didáticos como evidência fóssil para anagênese. No entanto, os livros didáticos terão que ser atualizados por causa de um estudo seminal de Hull & Norris (2009), que reanalisaram cuidadosamente os dados. Eles chegaram a uma conclusão muito diferente, maravilhosamente capturada já no título de seu artigo, “Evidence for abrupt speciation in a classic case of gradual evolution.” Em seu resumo, os autores escreveram: “Nossas descobertas fornecem uma reviravolta inesperada em um dos casos mais bem documentados de gradualismo filético dentro da linhagem”. Uma pena, especialmente porque descobertas anteriores semelhantes já haviam refutado vários outros casos (mais fracos) de aparente evolução gradual no plâncton marinho.

Outro exemplo famoso de livro didático para suposta evolução gradual foi o fóssil de caracóis de água doce do gênero planorbídeo Gyraulus da bacia do Steinheim do Mioceno, no sul da Alemanha. Na segunda metade do século XIX, o paleontólogo alemão Franz Hilgendorf estudou os caracóis desta famosa localidade de fósseis. Ele encontrou tipos de conchas muito diferentes que mais tarde atribuiu a diferentes espécies (Hilgendorf 1879). Ele reconstruiu seus relacionamentos presumidos como uma linhagem de transição com poucos ramos laterais. Ele publicou seus resultados com uma das primeiras árvores filogenéticas (Hilgendorf 1866, 1867), e assim (supostamente) a primeira evidência fóssil para a teoria de Darwin sobre a origem das espécies (Rasser 2006, Tassy 2011). A série de transformação proposta por Hilgendorf foi contestada pela maioria dos paleontólogos contemporâneos (Rasser 2014), mas apoiada por estudos posteriores de cientistas darwinianos (Rasser 2013). No entanto, não existe uma única análise cladística desses caracóis, de modo que falta qualquer apoio rigoroso para a reconstrução da árvore de Hilgendorf.

No entanto, as descobertas de Hilgendorf ainda foram celebradas como uma história de sucesso darwinista em uma série de artigos de meu ex-colega Michael Rasser (2006, 2013, 2014) do Museu de História Natural de Stuttgart, Alemanha. Ele também mencionou que houve dúvidas iniciais levantadas por alguns cientistas (por exemplo, Gottschick & Wenz 1919-1922 e Wenz 1922), que questionaram se os diferentes tipos de conchas realmente representavam espécies diferentes em vez de apenas diferentes morfos (os chamados ecofenótipos) da espécie. mesma espécie no mesmo habitat. Essa possibilidade foi inicialmente considerada pelo próprio Hilgendorf. Mas Rasser e outros paleontólogos evolucionistas descartaram essa crítica como infundada. Todos eles foram comprovados errados por um novo estudo de membros vivos do gênero Gyraulus no Lago Bangong no planalto tibetano (Clewing et al. 2015) como um análogo recente para o paleo habitat de Steinheim. O que Catharina Clewing e seus colegas descobriram no “Roof of the World” são diferentes tipos de conchas conhecidos dos fósseis de Steinheim como plasticidade ecofenotípica da mesma espécie viva no mesmo lago moderno, provavelmente induzida por estresse ecológico. Consequentemente, os caracóis de Steinheim não podem mais ser considerados evidências válidas para anagênese e provavelmente nem representam uma filogenia genuína. Honi soit qui mal y pense (Envergonhe-se quem nisto vê malícia) — você nunca ouvirá nenhum darwinista falar sobre tais resultados da ciência moderna.


“Que se envergonhe quem pensa mal disso” 


Entre os vertebrados, um dos poucos exemplos de suposta transição gradual entre duas espécies e gêneros é a dentição de primatas semelhantes a társios (Omomyidae) do Eoceno de Wyoming (Rose & Bown 1984). No entanto, os últimos autores mencionam que essa transição ocorre em mosaico com maior variação precedendo uma mudança para outro estado de caráter, o que pelo menos levanta dúvidas justificadas sobre o padrão gradual dessa transição. Estudos anteriores de Gingerich e colegas sobre dentes de mamíferos fósseis foram amplamente descartados como evidência de gradualismo (Gould & Eldredge 1977, Stanley 1979). Mais recentemente, Carr et al. (2017) afirmaram ter encontrado evidências de evolução anagenética em duas espécies de tiranossaurídeos do gênero Daspletosaurus do Cretáceo Superior em Montana. No entanto, a evidência não apoia o gradualismo filético, mas apenas a sucessão temporal imediata de duas espécies distintas, mas mais intimamente relacionadas no mesmo local. Isso pode ser interpretado como compatível com uma linhagem ancestral-descendente, mas eles não encontraram nenhum espécime intermediário entre essas duas espécies distintas. Assim, novamente nenhuma evidência de gradualismo ou anagênese.

Após o Ano de Darwin em 2009, comemorando seu 200º aniversário e o 150º aniversário da publicação de A Origem das Espécies, Hunt (2010) revisou todas as evidências fósseis de transições de espécies reunidas por paleontólogos em 150 anos de pesquisa desde a época de Charles Darwin . Ele enfatiza que na maioria dos casos as mudanças realmente observadas no registro fóssil não são direcionais, com taxas líquidas muito lentas.

Com base em evidências de peixes esgana-gata em uma sequência de estratos de alta resolução (Hunt et al. 2008), que sugerem uma mudança direcional dentro de 1.000 gerações, ele propõe que tal mudança seria muito rápida para ser resolvida na maioria das sequências geológicas. Que conveniente e enganoso porque não é um exemplo de transição de espécie para espécie, mas apenas mudança dentro de uma única espécie de esgana-gata (Gasterosteus doryssus). No entanto, a conclusão de Hunt, em relação a todas as evidências fósseis disponíveis, foi realmente surpreendente:

"As trajetórias sinuosas e flutuantes capturadas no registro fóssil não são inconsistentes com a centralidade da seleção natural como um mecanismo evolutivo, mas provavelmente não teriam sido previstas sem o benefício de um registro fóssil empírico."


Deixado com as mãos vazias

Isso pode parecer uma surpresa até mesmo para muitos críticos da evolução darwinista, pois nem os proponentes do design inteligente nem os criacionistas da Terra antiga ou da Terra jovem geralmente negam que o neodarwinismo possa explicar suficientemente a especiação de baixo nível, tal como a diversificação de uma espécie de tentilhões fundadores em várias espécies de tentilhões de Darwin nas Ilhas Galápagos. Que mesmo um fenômeno tão pequeno de evolução gradualista não seja apoiado por evidências fósseis dá razão para uma pausa. Talvez não devêssemos conceder muito, muito cedo a favor da teoria de Darwin. Os mecanismos neodarwinistas certamente podem explicar as mudanças intraespecíficas das frequências gênicas, como o aumento da resistência aos antibióticos em germes, mas não está claro se o valor explicativo desse processo pode ser estendido além disso. Isso não implica que “Deus fez isso”, como alguns críticos da teoria do design inteligente muitas vezes afirmam zombeteiramente. Mas isso implica que o apoio fóssil ao neodarwinismo ainda é muito exagerado em nosso sistema educacional. E sugere a necessidade de uma mudança de paradigma na biologia evolutiva, como está se tornando cada vez mais evidente. Não são os teóricos do design inteligente que negam a ciência, mas sim todos aqueles darwinistas teimosos. Estes ainda fecham os olhos para o número cada vez maior de anomalias que sua teoria de estimação não consegue explicar.

Mas há um lado positivo: na conferência “New Trends in Evolutionary Biology”, organizada pela prestigiosa Royal Society em Londres em novembro de 2016, o renomado teórico evolucionista Professor Gerd Müller mencionou explicitamente “formas não graduais de transição” em sua lista de cinco déficits explicativos da Síntese Evolutiva Moderna (também conhecida como neodarwinismo). Os outros pontos incluem novidade fenotípica e complexidade fenotípica. Você ouviu certo: tudo o que é realmente interessante na história da vida e que deveria ser explicado pela teoria de Darwin, essa mesma teoria na verdade não consegue explicar, pela admissão dos próprios biólogos evolucionistas modernos. Não é de admirar que intelectuais de alto escalão como o professor David Gelernter de Yale estejam desistindo de uma teoria bonita, mas refutada (Gelernter 2019).

A “beleza” das teorias não se correlaciona com sua verdade. Ou como a física teórica Sabine Hossenfelder perguntou recentemente em um novo livro: “Why should the laws of nature care about what I find beautiful??” (Anantaswamy 2018). A teoria basicamente morta da supersimetria é um exemplo perfeito. Ela falhou em todos os testes empíricos do LHC e levará todo o campo da teoria das cordas, que depende da supersimetria, para o túmulo. Milhares de cientistas e publicações desperdiçados em uma teoria bonita, mas falsa. O darwinismo está prestes a seguir seu exemplo, e o homem-macaco Australopithecus anamensis será lembrado como um de seus muitos agentes funerários.


REFERÊNCIAS

Alizon S, Kucera M, Jansen VAA 2008. Competition between cryptic species explains variations in rates of lineage evolution. PNAS 105(34), 12382–12386; DOI: 10.1073/pnas.0805039105.

Ananthaswamy A 2018. How the belief in beauty has triggered a crisis in physics. Nature 558, 186–187; DOI: 10.1038/d41586-018-05374-9.

Asfaw B 1987. The Belohdelie frontal: new evidence of early hominid cranial morphology from the Afar of Ethiopia. Journal of Human Evolution 16, 611–624.

Bechly G & Meyer SC 2017. Chapter 10. The Fossil Record and Universal Common Ancestry. pp. 331-361 in Moreland JP et al. (eds). Theistic Evolution: A Scientific, Philosophical, and Theological Critique. Crossway Publ., 1008 pp.

Benton MJ, Pearson PN 2001. Speciation in the fossil record. Trends in Ecology & Evolution 16(7), 405–411.

Benton MJ, Wills MA, Hitchin R 2000. Quality of the fossil record through time. Nature 403, 534–536, DOI: 10.1038/35000558.

Carr TD, Varricchio DJ, Sedlmayr JC, Roberts EM, Moore JR 2017. A new tyrannosaur with evidence for anagenesis and crocodile-like facial sensory system. Scientific Reports 7, 44942, 11 pp.; DOI: 10.1038/srep44942.

Darwin C 1859. On the Origin of Species … . John Murray, 502 pp.

Dawkins R 1986. The Blind Watchmaker. Norton & Company, xiii+332 pp.

Dawkins R 2009. The Greatest Show on Earth: The Evidence for Evolution. Free Press, 480 pp.

Clewing C et al. 2015. Ecophenotypic plasticity leads to extraordinary gastropod shells found on the “Roof of the World”. Ecology and Evolution 5(14), 2966–2979; DOI: 10.1002/ece3.1586.

Dembo et al. 2016. The evolutionary relationships and age of Homo naledi: An assessment using dated Bayesian phylogenetic methods. Journal of Human Evolution 97, 17–26; DOI: 10.1016/j.jhevol.2016.04.008.

Dzik J, Trammer J 1980. Gradual evolution of conodontophorids in the Polish Triassic. Acta Palaeontologica Polonica 25(1), 55–89.

Eldredge N & Gould SJ 1972. Punctuated equilibria: an alternative to phyletic gradualism. pp. 82–115 in: Schopf TJM (ed.) Models in Paleobiology. Freeman, Cooper & Co., 256 pp.

Foote M & Sepkoski JJ Jr 1999. Absolute measures of the completeness of the fossil record. Nature 398, 415–417, DOI: 10.1038/18872.

Gelernter D 2019. Giving Up Darwin. CRB May 1, 2019.

Gingerich PD 1983. Origin and evolution of species: evidence from the fossil record. pp. 125–130 in: Chaline J (ed.) Modalités, Rythmes, Mécanismes de L’Évolution Biologique: Gradualisme Phylétique ou Équilibres Ponctués? Colloques Internationaux du Centre National de la Recherche Scientifique 330.

Gottschick F & Wenz W. 1919–1922. Die Land- und Süßwassermollusken des Tertiärbeckens von Steinheim am Albuch. Nachrichtsblatt der deutschen malakozoologischen Gesellschaft 51, 1–23; 52, 120–127; 53, 33–47; 54, 06–109.

Gould SJ 1991. Opus 200. Natural History 100(8), 12–18; PDF.

Gould SJ & Eldredge N 1977. Punctuated Equilibria: The Tempo and Mode of Evolution Reconsidered. Paleobiology 3, 115–151; DOI: 10.1017/S0094837300005224.

Greshko M 2019. ‘Unprecedented’ skull reveals face of human ancestor. National Geographic Aug. 28, 2019.

Haile-Selassie Y 2010. Phylogeny of early Australopithecus: new fossil evidence from the Woranso-Mille (central Afar, Ethiopia). Phil. Trans. R. Soc. B 365, 3323–3331; DOI: 10.1098/rstb.2010.0064.

Haile-Selassie Y et al. 2019. A 3.8-million-year-old hominin cranium from Woranso-Mille, Ethiopia. Nature Aug. 28, 2019; DOI: 10.1038/s41586-019-1513-8.

Hilgendorf F 1866. Planorbis multiformis im Steinheimer Süßwasserkalk. Ein Beispiel von Gestaltveränderung im Laufe der Zeit. Weber, Berlin, 36 pp.

Hilgendorf, F 1867. Über Planorbis multiformis im Steinheimer Süßwasserkalk. Monatsberichte der Königlich Preussischen Akademie der Wissenschaften zu Berlin 1866, 474–504.

Hilgendorf F 1879. Zur Streitfrage des Planorbis multiformis. Kosmos 5(10–22), 90–99.

Hull PM & Norris RD 2009. Evidence for abrupt speciation in a classic case of gradual evolution. PNAS 106(50), 21224–21229; DOI: 10.1073/pnas.0902887106.

Hunt G, Bell MA, Travis MP 2008. Evolution toward a new adaptive optimum: Phenotypic evolution in a fossil stickleback lineage. Evolution 62(3), 700–710; DOI: 10.1111/j.1558-5646.2007.00310.x.

Hunt G 2010. Evolution in Fossil Lineages: Paleontology and The Origin of Species. The American Naturalist 176(S1), S61–S76; DOI: 10.1086/657057.

Kimble WH et al. 2006. Was Australopithecus anamensis ancestral to A. afarensis? A case of anagenesis in the hominin fossil record. Journal of Human Evolution 51, 134–152; DOI: 10.1016/j.jhevol.2006.02.003.

Malmgren BA, Kennett JP 1981. Phyletic Gradualism in a Late Cenozoic Planktonic Foraminiferal Lineage; DSDP Site 284, Southwest Pacific. Paleobiology 7(2), 230–240; DOI: 10.1017/S0094837300004000.

Marshall M 2019. We’ve finally found a skull from one of our most important ancestors. New Scientist Aug. 28, 2019.

Max Planck Society 2019. A 3.8-million-year-old fossil from Ethiopia reveals the face of Lucy’s ancestor. Phys.org Aug. 28, 2019.

Pearson PN, Ezard TH 2014. Evolution and speciation in the Eocene planktonic foraminifer Turborotalia. Paleobiology 40(1), 130–143; DOI: 10.1666/13004.

Ozawa T 1975. Evolution of Lepidolina multiseptata (Permian foraminifer) in East Asia. Mem. Fac. Sci. Kyushu Univ. Ser. D Geol. 23, 117–164.

Price M 2019. Stunning ancient skull shakes up human family tree. Science Aug. 28, 2019; DOI 10.1126/science.aaz3033.

Rasser M 2006. 140 Jahre Steinheimer Schnecken-Stammbaum: der älteste fossile Stammbaum aus heutiger Sicht. Geologica et Palaeontologica 40, 195–199.

Rasser M 2013. Darwin’s dilemma: The Steinheim snails’ point of view. Zoosystematics and Evolution 89(1), 13–20; DOI: 10.1002/zoos.201300002.

Rasser M 2014. Evolution in isolation: the Gyraulus species flock from Miocene Lake Steinheim revisited. Hydrobiologia 739(1), 7–24; DOI 10.1007/s10750-013-1677-4.

Rose KD, Bown TM 1984. Gradual phyletic evolution at the generic level in early Eocene omomyid primates. Nature 309, 250–252; DOI: 10.1038/309250a0.

Saylor et al. 2019. Age and context of mid-Pliocene hominin cranium from Woranso-Mille, Ethiopia. Nature Aug. 28, 2019; DOI: 10.1038/s41586-019-1514-7.

Spoor F 2019. Elusive cranium of early hominin found. Nature Aug. 28, 2019; DOI: 10.1038/d41586-019-02520-9.

Stanley SM 1979. Macroevolution: Pattern and Process. Freeman & Co., 332 pp.

Tassy P 2011. Trees before and after Darwin. J. Zool. Syst. Evol. Res. 49(2), 89–101, DOI: 10.1111/j.1439-0469.2010.00585.x.

The Leakey Foundation 2019. A 3.8-Million-Year-Old Fossil From Ethiopia Reveals the Face of Lucy’s Ancestor. Leakey Foundation Aug. 28, 2019.

Wenz W 1922. Die Entwicklungsgeschichte der Steinheimer Planorben und ihre Bedeutung für die Deszendenzlehre. Natur und Museum 52, 135–158.

Foto: Australopithecus africanus skull, by José Braga; Didier Descouens [CC BY-SA 4.0], via Wikimedia Commons.

Günter Bechly

PESQUISADOR SÊNIOR, CENTER FOR SCIENCE AND CULTURE

Günter Bechly é um paleoentomologista alemão especializado em história fóssil e sistemática de insetos (especialmente libélulas), o mais diversificado grupo de animais. Ele atuou como curador de âmbar e insetos fósseis no departamento de paleontologia do Museu Estadual de História Natural (SMNS) em Stuttgart, Alemanha. Ele também é membro sênior do Centro de Ciência e Cultura do Discovery Institute. Dr. Bechly obteve seu Ph.D. em geociências pela Eberhard-Karls-University em Tübingen, Alemanha.

Surgimento Espontâneo da Vida e a Segunda Lei da Termodinâmica

segunda-feira, abril 18, 2022

Spontaneous Appearance of Life and the Second Law of Thermodynamics

David W. Snoke

Published Online: 12 Apr 2022

Page range: 1 - 11

DOI: https://doi.org/10.2478/biocosmos-2022-0006

© 2022 David W. Snoke, published by Sciendo

This work is licensed under the Creative Commons Attribution-NonCommercial-NoDerivatives 3.0 License.


Abstract

It is often argued both by scientists and the lay public that it is extremely unlikely for life or minds to arise spontaneously, but this argument is hard to quantify. In this paper I make this argument more rigorous, starting with a review of the concepts of information and entropy, and then examining the specific case of Maxwell's demon and how it relates to living systems. I argue that information and entropy are objective physical quantities, defined for systems as a whole, which allow general arguments in terms of physical law. In particular, I argue that living systems obey the same rules as Maxwell's demons.

FREE PDF GRATIS: BioCosmos

O que é o Design Inteligente e como deveria ser defendido.

domingo, abril 17, 2022

O que é o Design Inteligente e como nós deveríamos defendê-lo.

Casey Luskin

3 de dezembro de 2021, 1:55 PM


Nota do editor: Este artigo é um trecho de um capítulo do livro recém-lançado The Comprehensive Guide to Science and Faith: Exploring the Ultimate Questions About Life and the Cosmos.

A objeção mais comum ao DI é que não é ciência, mas religião. Para entender porque essa objeção é falha, devemos primeiro avaliar como os teóricos do DI defendem o design.


O design inteligente é uma teoria científica que sustenta que muitas características do universo e dos seres vivos são melhor explicadas por uma causa inteligente, em vez de um processo não direcionado como a seleção natural. O DI visa discriminar entre objetos gerados por mecanismos materiais e aqueles causados pela inteligência.


Estudando agentes humanos

Os teóricos do DI começam observando como os agentes inteligentes agem quando projetam coisas. Ao estudar os agentes inteligentes humanos, aprendemos que quando os agentes inteligentes agem, eles geram altos níveis de informação. O tipo de informação que indica o design intencional é geralmente chamado de complexidade especificada ou informação complexa especificada (ICE para abreviar). Vamos discutir brevemente este termo.

A grosso modo, algo é complexo se for improvável. Mas a complexidade ou a improbabilidade por si só não é suficiente para inferir o design intencional. Para ver por que, imagine que você ganhe uma mão de cinco cartas para um jogo de pôquer. Seja qual for a mão que você receber, será muito improvável. Mesmo se você conseguir uma boa mão, como um sequência de cinco cartas do mesmo naipe ou um royal flush, você não vai necessariamente dizer: “Ah! O baralho estava com as cartas marcadas.” Por quê? Porque coisas improváveis acontecem o tempo todo. Não inferimos design intencional simplesmente porque algo é improvável. Precisamos de mais – de acordo com o teórico do DI William Dembski, isso é especificação. Algo é especificado se corresponder a um padrão independente.

Para entender a especificação, imagine que você é um turista visitando as montanhas da América do Norte. Primeiro, você se depara com o Monte Rainier, um enorme vulcão adormecido no noroeste do Pacífico. Esta montanha é incomparável; de fato, se todas as combinações possíveis de rochas, picos, cordilheiras, ravinas, rachaduras e penhascos forem consideradas, sua forma exata é extremamente improvável e complexa. Mas você não infere design intencional simplesmente porque o Monte Rainier tem uma forma complexa. Por quê? Porque você pode facilmente explicar sua forma através dos processos naturais de erosão, elevação, aquecimento, resfriamento, congelamento, degelo, intemperismo, etc. Não existe um padrão especial e independente para a forma do Monte Rainier. Sua complexidade por si só não é suficiente para inferir design intencional.

Agora você visita uma montanha diferente – o Monte Rushmore em Dakota do Sul. Esta montanha também tem uma forma muito improvável, mas sua forma é especial. Combina com um padrão – os rostos de quatro presidentes famosos. Com o Monte Rushmore, você não observa apenas a complexidade; você também encontra especificação. Assim, você inferiria que sua forma tem design intencional (Figura 1).


Figura 1. Qual dessas duas montanhas tem uma forma que nos permite detectar o design intencional? O Monte Rainier (esquerda) tem uma forma improvável (complexa), mas não é especificada, então não detectamos design intencional. Em contraste, o Monte Rushmore (à direita) tem uma forma complexa e especificada, então detectamos o design intencional. 

Créditos: Monte Rainier: Casey Luskin. Monte Rushmore: Dean Franklin, CC BY 2.0 (https://creativecommons.org/licenses/by/2.0), via Wikimedia Commons.


Usando o método científico


Além disso, podemos ver que o DI é ciência e não religião porque o DI usa o método científico para fazer suas afirmações. O método científico é comumente descrito como um processo de quatro etapas envolvendo observação, hipótese, experimento e conclusão. O DI usa este método preciso:

- Observações: Os teóricos do DI começam observando que os agentes inteligentes produzem altos níveis de ICE.

- Hipótese: Os teóricos do DI levantam a hipótese de que, se um objeto natural tiver design intencional, ele conterá alto ICE.

- Experimento: Os cientistas realizam testes experimentais em objetos naturais para determinar se eles contêm alto ICE. Por exemplo, testes de sensibilidade mutacional mostram que as enzimas são ricas em ICE: elas contêm ordenações altamente improváveis de aminoácidos que correspondem a um padrão de sequência preciso necessário para a funcionar. 1 Outra forma facilmente testável de ICE é a complexidade irredutível, em que um sistema requer um certo conjunto central de partes interativas para funcionar. Experimentos de nocaute genético mostram que algumas máquinas moleculares são irredutivelmente complexas. 2

Conclusão: Quando pesquisadores de DI encontram alto ICE em DNA, proteínas e máquinas moleculares, eles concluem que tais estruturas têm design intencional.


Muito mais amplo que a biologia


Ao contrário das concepções populares, no entanto, o DI é muito mais amplo do que a biologia. As leis da física e da química mostram evidências de design porque são afinadas para permitir que a vida exista (veja os capítulos 20, 21, 22, 23 para detalhes). As leis universais são complexas na medida em que exibem configurações improváveis - os cosmólogos calcularam que nosso universo é incrivelmente ajustado para a vida em menos de uma parte em 1010^123. 3 (Isso é 1 em 10 elevado ao expoente de 1010^123; nem temos palavras ou analogias para transmitir números tão pequenos!) No entanto, essas leis são especificadas porque correspondem a uma faixa extremamente estreita de valores e configurações necessárias para a existência de vida. Isso novamente é alto ICE e indica design intencional. Como observou o Prêmio Nobel Charles Townes:

O design inteligente, visto do ponto de vista científico, parece ser bastante real. Este é um universo muito especial: é notável que tenha saído assim. Se as leis da física não fossem exatamente como são, nós não estaríamos aqui. 4


Uma fonte conhecida


Resumindo, as descobertas científicas do século passado mostraram que a vida é fundamentalmente baseada em:

- Uma grande quantidade de ICE codificado digitalmente em uma linguagem bioquímica em nosso DNA.

- Um sistema de processamento de informações semelhante a um computador onde a maquinaria celular lê, interpreta e executa os comandos programados no DNA para produzir proteínas funcionais.

- Máquinas moleculares irredutivelmente complexas compostas por proteínas finamente afinadas.

- Requintado ajuste fino de leis e constantes universais.

De onde, em nossa experiência, vem o código digital baseado em linguagem, programação semelhante a computador, máquinas e outras estruturas de alto ICE? Eles têm apenas uma fonte conhecida: inteligência.

O argumento para o design intencional brevemente esboçado aqui é inteiramente baseado empiricamente. Oferece evidências positivas para o design intencional ao encontrar, na natureza, os tipos de informação e complexidade que sabemos, por experiência, derivar de causas inteligentes. (Esse caso positivo para o design intencional é mais elaborado no capítulo 16.) Pode-se discordar das conclusões do DI, mas não se pode alegar razoavelmente que esse argumento é baseado em religião, fé ou política. É baseado na ciência.


Notas


Douglas D. Axe, “Extreme Functional Sensitivity to Conservative Amino Acid Changes on Enzyme Exteriors,” Journal of Molecular Biology, 301 (2000), 585-595; Douglas D. Axe, “Estimating the Prevalence of Protein Sequences Adopting Functional Enzyme Folds,” Journal of Molecular Biology 341 (2004), 1295-1315.

Transcrição do depoimento de Scott Minnich, Kitzmiller v. Dover (M.D. Pa., PM Testimony, November 3, 2005), 103-112; Robert M. Macnab, “Flagella,” in Escherichia Coli and Salmonella Typhimurium: Cellular and Molecular Biology, Vol. 1, eds. Neidhardt et al. (Washington, DC: American Society for Microbiology, 1987), 73-74.

Roger Penrose e M. Gardner, The Emperor’s New Mind: Concerning Computers, Minds, and the Laws of Physics(Oxford, UK: Oxford University Press, 2002).

Bonnie Azab Powell, “‘Explore as much as we can’: Nobel Prize winner Charles Townes on evolution, intelligent design, and the meaning of life,” UC Berkeley News Center (June 17, 2005), https://www.berkeley.edu/news/media/releases/2005/06/17_townes.shtml (acessado em 17/04/2022).

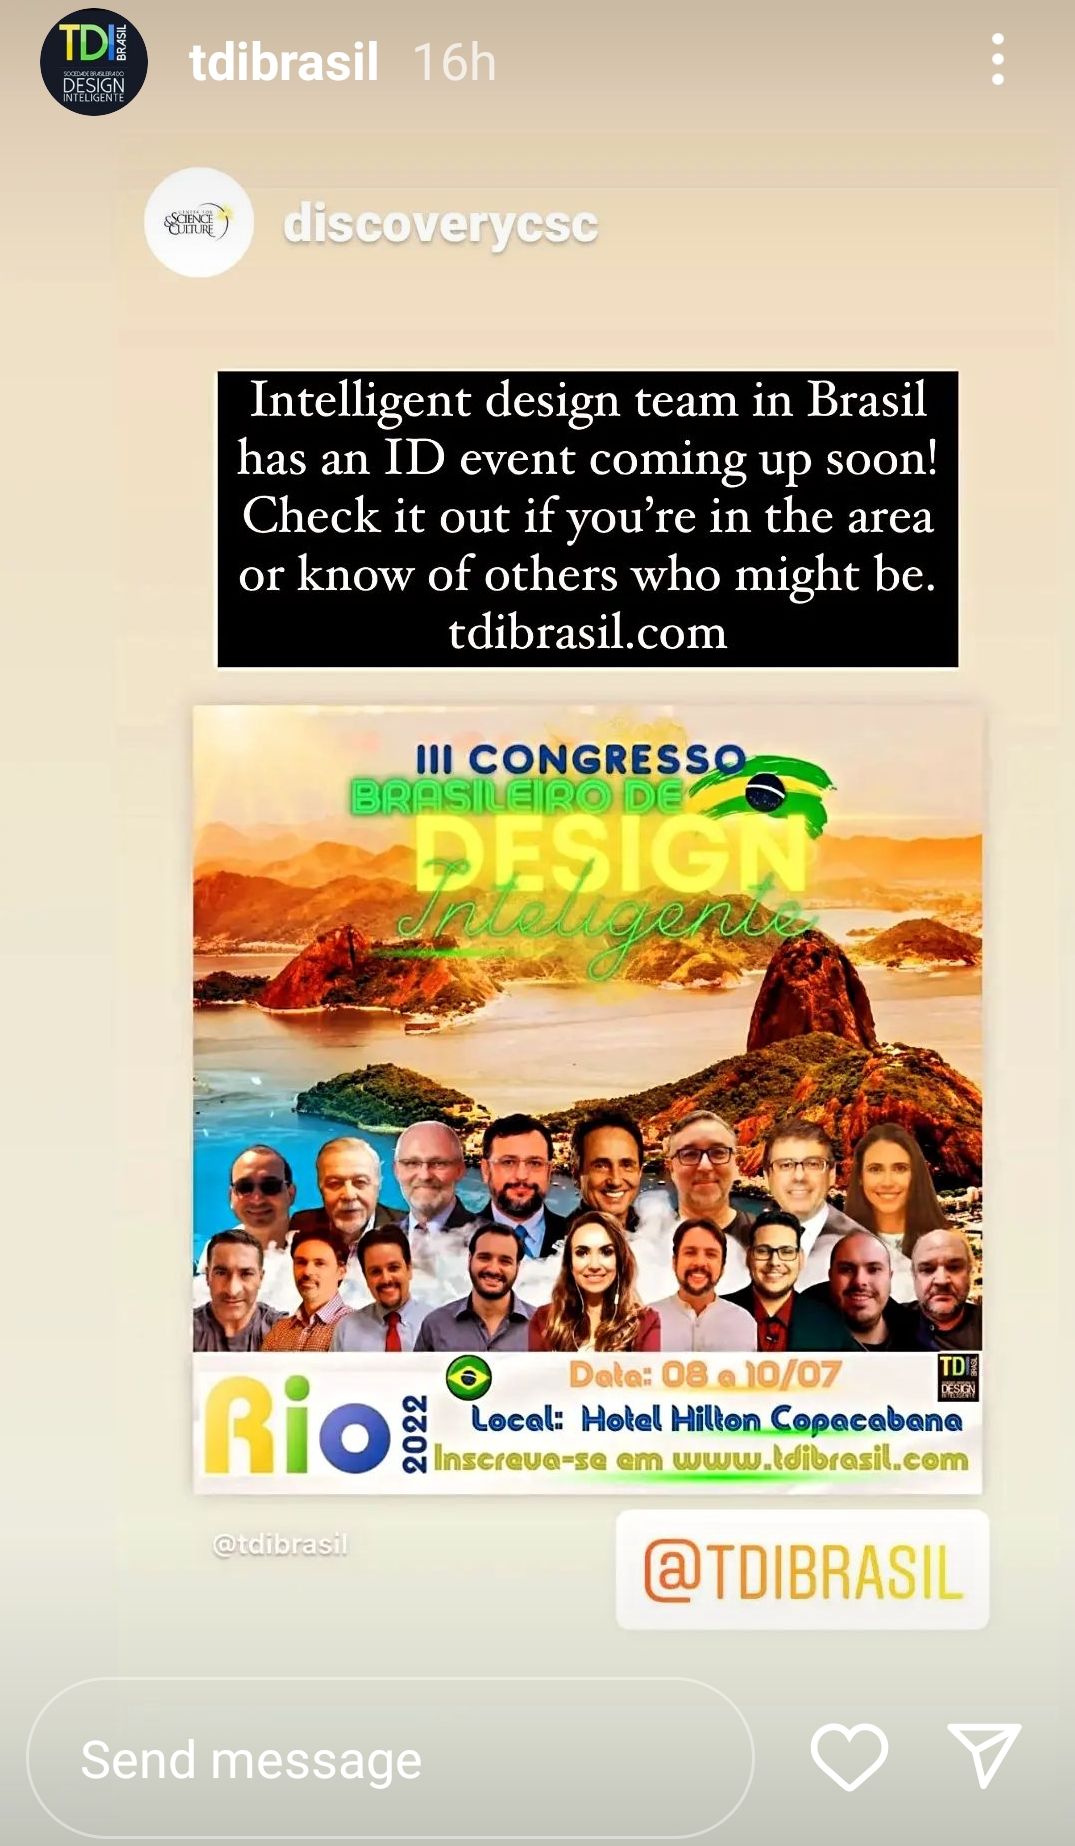
III Congresso Brasileiro de Design Inteligente - Rio de Janeiro - 08-10 de junho de 2022

quinta-feira, abril 14, 2022


Inscrições no https://www.tdibrasil.com
 

A volta do blog Desafiando a Nomenklatura científica


A última postagem deste blog foi em 29 de junho de 2021. Este longo silêncio se deu devido à pandemia da COVID-19 e ter ficado mais uma vez sem notebook - o quarto que se avaria neste embate com a Nomenklatura científica. Para os que pensam ser este blogger financiado pelo Discovery Institute nos Estados Unidos e no Brasil, esclareço - não recebo um centavo de dólar ou real dessas organizações. Mantenho somente laços cooperativos na disseminação da cientificidade da teoria do Design Inteligente e apontar as dificuldades epistêmicas da teoria da evolução no contexto de justificação teórica.

Assim sendo, vamos retomar nossas atividades. Não garanto publicar o que ficou para trás de cientificamente interessante. Se eu me lembrar, aqui e ali, eu posto.

Woese, uma voz do passado, conclamou uma nova biologia para um novo século - uma ciência mais fundamental

terça-feira, junho 29, 2021

American Society for Microbiology

Microbiology and Molecular Biology Reviews Volume 68, Issue 2, June 2004, Pages 173-186


Review

A New Biology for a New Century

Carl R. Woese*

Department of Microbiology, University of Illinois, Urbana, Illinois 61801


Source/Fonte: Science

SUMMARY

Biology today is at a crossroads. The molecular paradigm, which so successfully guided the discipline throughout most of the 20th century, is no longer a reliable guide. Its vision of biology now realized, the molecular paradigm has run its course. Biology, therefore, has a choice to make, between the comfortable path of continuing to follow molecular biology's lead or the more invigorating one of seeking a new and inspiring vision of the living world, one that addresses the major problems in biology that 20th century biology, molecular biology, could not handle and, so, avoided. The former course, though highly productive, is certain to turn biology into an engineering discipline. The latter holds the promise of making biology an even more fundamental science, one that, along with physics, probes and defines the nature of reality. This is a choice between a biology that solely does society's bidding and a biology that is society's teacher.

Copyright © 2004 American Society for Microbiology

*Mailing address: Department of Microbiology, University of Illinois, 601 S. Goodwin, Urbana, IL 61801. Phone: (217) 333-9369. Fax: (217) 244-6697. E-mail: carl@ninja.life.uiuc.edu.

O mecanismo atômico da periodicidade biológica elimina a "teoria atual" da evolução

segunda-feira, junho 28, 2021

Biological Periodicity’s Atomic Mechanism Disposes of the “Current Theory” of Evolution

Authors

Antonio Lima-de-Faria

University of Lund


ABSTRACT

Physics led the way in the creation of Molecular Biology by employing X-ray crystallography in the elucidation of the atomic structure of proteins and DNA. Now it is physics again, by using large accelerators of electrons and neutrons, that is transforming molecular biology into Atomic Biology. This transformation process is guided by the establishment of periodicity, a phenomenon that can now be shown to start with elementary particles, to extend to atoms and macromolecules, and to occur equally among living organisms including humans. Biological periodicity was established in the following properties: vision, regeneration, luminescence, flight, placenta, penis, plant carnivory and mental ability. Significant is that three of these properties do not start at the cell or the organism, as previously thought, but emerge already in crystals and minerals which have no genes, and where organization is decided by atomic and electronic interactions. The punctuated reappearance of a given property, which leads to periodicity, is based on its own evolution of DNA. This is demonstrated by the formation of the placenta, which in plants and in humans, is decided by the same DNA sequences. Also, vision, which appears in the simplest invertebrates as well as in humans results from the action of the same gene Pax6. It is this DNA homology which allows the reappearance of the same pattern, in the most different organisms. The law of periodicity which has been enunciated at the atomic level holds equally well for the periodicity found in living organisms allowing predictions.

AUTHOR BIOGRAPHY

Antonio Lima-de-Faria, University of Lund

Professor Emeritus of Molecular Cytogenetics, Lund University, Lund, Sweden

FREE PDF GRATIS: Organisms

Interpretando a história da biologia evolutiva através de um prisma kuhniano: faz sentido ou não?

Perspectives on Science

Volume 29, Issue 1

January-February 2021

February 01 2021

Interpreting the History of Evolutionary Biology through a Kuhnian Prism: Sense or Nonsense? 

Koen B. Tanghe, Lieven Pauwels, Alexis De Tiège, Johan Braeckman

Author and Article Information

Koen B. Tanghe

Department of Philosophy and Moral Sciences, Universiteit Gent, Belgium

Lieven Pauwels

Department of Criminology, Criminal Law and Social Law, Universiteit Gent, Belgium

Alexis De Tiège

Department of Philosophy and Moral Sciences, Universiteit Gent, Belgium

Johan Braeckman

Department of Philosophy and Moral Sciences, Universiteit Gent, Belgium

We would like to thank two anonymous reviewers for their constructive review, as well as the editor Alex Levine.

Online Issn: 1530-9274

Print Issn: 1063-6145

© 2021 by The Massachusetts Institute of Technology

Perspectives on Science (2021) 29 (1): 1–35.

https://doi.org/10.1162/posc_a_00359

Source/Fonte: New Scientist

Abstract

Traditionally, Thomas S. Kuhn’s The Structure of Scientific Revolutions (1962) is largely identified with his analysis of the structure of scientific revolutions. Here, we contribute to a minority tradition in the Kuhn literature by interpreting the history of evolutionary biology through the prism of the entire historical developmental model of sciences that he elaborates in The Structure. This research not only reveals a certain match between this model and the history of evolutionary biology but, more importantly, also sheds new light on several episodes in that history, and particularly on the publication of Charles Darwin’s On the Origin of Species (1859), the construction of the modern evolutionary synthesis, the chronic discontent with it, and the latest expression of that discontent, called the extended evolutionary synthesis. Lastly, we also explain why this kind of analysis hasn’t been done before.

FREE PDF GRATIS: Perspectives on Science

Nova descoberta desafia princípio central em biologia: as células humanas podem escrever sequências de RNA no DNA

quarta-feira, junho 23, 2021

Polθ reverse transcribes RNA and promotes RNA-templated DNA repair

Gurushankar Chandramouly1,†, Jiemin Zhao2,†, Shane McDevitt1,†, Timur Rusanov1, Trung Hoang1, Nikita Borisonnik1, Taylor Treddinick1, Felicia Wednesday Lopezcolorado3, Tatiana Kent1, Labiba A. Siddique1, Joseph Mallon1, Jacklyn Huhn1, Zainab Shoda1, Ekaterina Kashkina1, Alessandra Brambati4, Jeremy M. Stark3, Xiaojiang S. Chen2 and Richard T. Pomerantz1,*

1 Department of Biochemistry and Molecular Biology, Sidney Kimmel Cancer Center, Thomas Jefferson University, Philadelphia, PA, USA.

2 Molecular and Computational Biology, USC Dornsife Department of Biological Sciences, University of Southern California, Los Angeles, CA, USA.

3 Beckman Research Institute of the City of Hope, Duarte, CA, USA.

4 Department of Cell Biology, New York University School of Medicine, New York, NY, USA.

↵*Corresponding author. Email: richard.pomerantz@jefferson.edu

↵† These authors contributed equally to this work.

Science Advances 11 Jun 2021: Vol. 7, no. 24, eabf1771


Abstract

Genome-embedded ribonucleotides arrest replicative DNA polymerases (Pols) and cause DNA breaks. Whether mammalian DNA repair Pols efficiently use template ribonucleotides and promote RNA-templated DNA repair synthesis remains unknown. We find that human Polθ reverse transcribes RNA, similar to retroviral reverse transcriptases (RTs). Polθ exhibits a significantly higher velocity and fidelity of deoxyribonucleotide incorporation on RNA versus DNA. The 3.2-Å crystal structure of Polθ on a DNA/RNA primer-template with bound deoxyribonucleotide reveals that the enzyme undergoes a major structural transformation within the thumb subdomain to accommodate A-form DNA/RNA and forms multiple hydrogen bonds with template ribose 2′-hydroxyl groups like retroviral RTs. Last, we find that Polθ promotes RNA-templated DNA repair in mammalian cells. These findings suggest that Polθ was selected to accommodate template ribonucleotides during DNA repair.

FREE PDF GRATIS: Science Advances Sup. Info.

Cientistas descobrem uma nova característica que distingue os humanos modernos dos Neandertais

segunda-feira, junho 21, 2021

Reduced purine biosynthesis in humans after their divergence from Neandertals

Vita Stepanova, Kaja Ewa Moczulska, Guido N Vacano, Ilia Kurochkin, Xiangchun Ju, Stephan Riesenberg, Dominik Macak, Tomislav Maricic, Linda Dombrowski, Maria Schörnig, Konstantinos Anastassiadis, Oliver Baker, Ronald Naumann, Ekaterina Khrameeva, Anna Vanushkina, Elena Stekolshchikova, Alina Egorova, Anna Tkachev, Randall Mazzarino, Nathan Duval, Dmitri Zubkov, Patrick Giavalisco, Terry G Wilkinson, David Patterson, Philipp Khaitovich, Svante Pääbo

Skolkovo Institute for Science and Technology, Russian Federation; Institute for Information Transmission Problems, Russian Academy of Sciences, Russian Federation; Max Planck Institute for Evolutionary Anthropology, Germany; The Eleanor Roosevelt Institute and Knoebel Institute for Healthy Aging, University of Denver, United States; Okinawa Institute of Science and Technology, Japan; Center for Molecular and Cellular Bioengineering, Biotechnology Center, Technical University Dresden, Germany; Max Planck Institute of Molecular Cell Biology and Genetics, Germany; Max Planck Institute for Biology of Ageing, Germany

Research Article May 4, 2021 Cite as: eLife 2021;10:e58741 DOI: 10.7554/eLife.58741


Source/Fonte: Live Science

Abstract

We analyze the metabolomes of humans, chimpanzees, and macaques in muscle, kidney and three different regions of the brain. Although several compounds in amino acid metabolism occur at either higher or lower concentrations in humans than in the other primates, metabolites downstream of adenylosuccinate lyase, which catalyzes two reactions in purine synthesis, occur at lower concentrations in humans. This enzyme carries an amino acid substitution that is present in all humans today but absent in Neandertals. By introducing the modern human substitution into the genomes of mice, as well as the ancestral, Neandertal-like substitution into the genomes of human cells, we show that this amino acid substitution contributes to much or all of the reduction of de novo synthesis of purines in humans.

FREE PDF GRATIS: eLIFE

Espécies, especiação e paleontologia até a Síntese Moderna: temas persistentes e questões sem resposta

Palaeontology Volume 56, Issue 6 p. 1199-1223

Original Article

Free Access

Species, speciation and palaeontology up to the Modern Synthesis: persistent themes and unanswered questions

Warren D. Allmon

First published: 15 July 2013


Abstract

Although it has been variously defined and discussed, the ‘species problem’ in evolutionary palaeontology actually consists of at least three separate but closely related questions: (1) What are species in living organisms? (the ‘species nature problem’); (2) To what degree can ‘species’ as recognized in living organisms be recognized in the fossil record? (the ‘species recognition problem’); (3) To the degree that species can be so recognized, to what degree can species be studied as modern species are, that is, what can we learn about the origin and evolution of species from fossils that we could not otherwise learn? This can be called the ‘species study problem’. A critical survey of the history of thinking about the nature and origin of species indicates that answers to at least two of these three questions (the first and third) have been remarkably persistent in both palaeontological and neontological views over the past 250 years, and the range of answers to them has changed remarkably little. The nature of Darwin's ideas on these issues, which has remained controversial, is an epitome of the persistent complexity and difficulty of the questions involved. This historical survey has a number of implications for modern palaeontological views of the nature and origin of species, including that the nature of species is a substantive (as opposed to a purely semantic) issue, likely to be decided empirically and not just theoretically, and that the roles of selection and isolation in the origin of species are likely diverse and complex.

FREE PDF GRATIS: Palaeontology

Mais uma hipótese sobre a origem da vida: formação de ligações peptídicas mecanoquímicas

terça-feira, junho 15, 2021

Angewandte Chemie International EditionVolume 60, Issue 23 p. 12727-12731

Communication

Mechanochemical Prebiotic Peptide Bond Formation**

Tomislav Stolar,Saša Grubešić,Dr. Nikola Cindro,Prof. Dr. Ernest Meštrović,Dr. Krunoslav Užarević,Dr. José G. Hernández

First published: 26 March 2021


Source/Fonte: PhysOrg

Abstract

The presence of amino acids on the prebiotic Earth, either stemming from endogenous chemical routes or delivered by meteorites, is consensually accepted. Prebiotically plausible pathways to peptides from inactivated amino acids are still unclear as most oligomerization approaches rely on thermodynamically disfavored reactions in solution. Now, a combination of prebiotically plausible minerals and mechanochemical activation enables the oligomerization of glycine at ambient temperature in the absence of water. Raising the reaction temperature increases the degree of oligomerization concomitantly with the formation of a commonly unwanted cyclic glycine dimer (DKP). However, DKP is a productive intermediate in the mechanochemical oligomerization of glycine. The findings of this research show that mechanochemical peptide bond formation is a dynamic process that provides alternative routes towards oligopeptides and establishes new synthetic approaches for prebiotic chemistry.

+++++


A teoria da evolução de Darwin se transformando em teoria do Design Inteligente???

sexta-feira, junho 11, 2021

Towards an engineering theory of evolution

Simeon D. Castle, Claire S. Grierson & Thomas E. Gorochowski

Nature Communications volume 12, Article number: 3326 (2021)


Abstract

Biological technologies are fundamentally unlike any other because biology evolves. Bioengineering therefore requires novel design methodologies with evolution at their core. Knowledge about evolution is currently applied to the design of biosystems ad hoc. Unless we have an engineering theory of evolution, we will neither be able to meet evolution’s potential as an engineering tool, nor understand or limit its unintended consequences for our biological designs. Here, we propose the evotype as a helpful concept for engineering the evolutionary potential of biosystems, or other self-adaptive technologies, potentially beyond the realm of biology.

FREE PDF GRATIS: Nature Communications

Biologia funcional no seu contexto natural: mero acaso, fortuita necessidade ou design inteligente?

quarta-feira, junho 09, 2021

Functional biology in its natural context: A search for emergent simplicity

Joy Bergelson, Martin Kreitman, Dmitri A Petrov, Alvaro Sanchez, Mikhail Tikhonov

Department of Ecology & Evolution, University of Chicago, United States; 
Department of Biology, Stanford University, United States; 
Department of Ecology & Evolutionary Biology, Yale University, United States; Department of Physics, Washington University in St Louis, United States

Review Article Jun 7, 2021


Abstract

The immeasurable complexity at every level of biological organization creates a daunting task for understanding biological function. Here, we highlight the risks of stripping it away at the outset and discuss a possible path toward arriving at emergent simplicity of understanding while still embracing the ever-changing complexity of biotic interactions that we see in nature.

EXCERPT/EXCERTO:

As we have argued, the enterprise of studying organisms in isolation and as static, already evolved entities, while hugely successful, is also profoundly limited. Our belief, which lies in contrast to Jacques Monod’s famous dictum — ‘Anything found to be true of E. coli must also be true of elephants’ — is that much of what one learns about the functional behavior of E.coli in isolation hardly even extends to E.coli in the gut, let alone to elephants in the savannah. The heart of our proposal, here, is thus the creation of a new field of Function of Evolving Systems that focuses on the function of organisms in the communities in which they reside, over periods of time when interactions evolve. It is both exciting intellectually, and essential practically.

+++++

FREE PDF GRATIS: eLIFE

A árvore de Darwin se transforma em uma rede, com implicações para o Design Inteligente

quinta-feira, junho 03, 2021

Evolution News @DiscoveryCSC

1 ° de junho de 2021, 12h41


A nova genômica poderia iniciar uma revolução científica que apanhe Darwin em sua teia? Sua “árvore da vida” icônica está se transformando em uma rede, graças a uma enxurrada de novos dados mostrando que a transferência lateral de genes (TLG) é onipresente. Se as opiniões de alguns geneticistas se enraizarem, os estudos filogenéticos podem se tornar relíquias do último paradigma. As implicações para a teoria da evolução são enormes.

Desde que Darwin esboçou uma árvore ramificada em suas anotações, o ícone da “árvore da vida” tornou-se um elemento fixo na mente de biólogos e estudantes. Parece intuitivamente óbvio: como os indivíduos descendem de pais e avós, cada espécie possui uma linhagem genética. De acordo com o pensamento de Darwin, essas linhagens se conectam no tempo devido à "origem das espécies" repetida pela seleção natural. Cada espécie teria se originado em um desses pontos de ramificação. Se seguidos o suficiente em regressão, todos os galhos e galhos bifurcados se conectariam em um padrão semelhante a uma árvore de descendência comum universal. Implícito nesta imagem está a suposição de que os ramos não se reconectam; uma vez bifurcados, eles compartilham as características do ancestral comum, mas evoluem nele em sua própria direção.

Um Profundo Repensar

Escrevendo na Current Biology, Cédric Blais e John M. Archibald relembram a revolução da genômica moderna e o profundo repensar que ela está causando sobre a "metáfora unificadora da biologia", a árvore da vida.

"Há cerca de vinte anos, as bases da árvore da vida foram abaladas pela compreensão de que os genomas procarióticos são compostos de genes com diferentes histórias evolutivas. Com A Origem das Espécies de Charles Darwin e as vívidas representações de Ernst Haeckel de árvores evolucionárias, a árvore da vida criou raízes como uma metáfora unificadora da biologia. A filogenética molecular surgiu nas décadas de 1960 e 1970 e seguiu o modelo de Darwin: os ramos da árvore da vida divergiram e nunca se fundiram (Quadro 1).

Esperava-se que a genômica comparativa solidificasse essa visão da evolução, mas os genomas de bactérias e arqueas foram identificados como mosaicos na natureza, tendo adquirido genes de táxons estreita e distantemente relacionados por transferência gênica lateral (ou horizontal). Essa percepção desbancou a primazia da descendência vertical na história da vida e seu uso na classificação taxonômica dos organismos. Isso iniciou um acalorado debate sobre a melhor forma de descrever as relações entre os organismos na natureza. A árvore da vida deveria ser abandonada e poderia ser adequadamente substituída por uma rede de vida? Ou a transferência lateral de genes era amplamente inconsequente, mero ruído que poderia e deveria ser filtrada, com o sinal restante revelando a verdadeira árvore da vida?" [Ênfase adicionada.]

Pense em como uma revolução científica profunda está em curso, quando a "metáfora unificadora da biologia" está sendo questionada. Alguns geneticistas estão com um machado na mão na base da árvore icônica. Blais e Archibald destacam que o aumento exponencial no sequenciamento do genoma, particularmente de micróbios, levou a essa grande reconsideração. Isso não estaria acontecendo sem a grande quantidade de dados forçar isso. Veja os conceitos há muito aceitos que estão correndo risco:

- A existência de uma única árvore filogenética

- O conceito de Carl Woese de três domínios (bactérias, archaea, eukarya)

- A prática de filogenética molecular

- Taxonomia

- Ancestralidade comum universal

Tomar partido

Como em qualquer revolução, as pessoas tomam partido. Os radicais em uma extremidade do espectro ficam felizes em derrubar a velha árvore e substituí-la por uma rede moderna. Os radicais do outro lado querem salvar a árvore, como os conservacionistas sentados nos galhos para parar as motosserras. Então, há um meio-termo onde os pacificadores pensam que os dois conceitos podem coexistir e todos ficarão felizes. Todo cientista, porém, deve estar unido quanto aos fatos. Blais e Archibald descrevem a política partidária sem tomar partido, mas apontam que o TLG é real e não pode ser ignorado:

"A primazia da árvore da vida deve ser qualificada pelo reconhecimento de que ela representa apenas uma fração da história evolutiva e que as redes capturam dinâmicas evolutivas genuínas que são incompatíveis com ela. As redes agora abrangem muito mais entidades e processos do que foram inicialmente considerados ao discutir a árvore e a rede da vida. Mesmo que a árvore da vida sobreviva, agora está claro que linhagens verticais e reticuladas coexistem em comunidades de troca gênica de topologias variadas."

E ainda assim, pense em como a imagem da árvore muda se os galhos se interconectam. A árvore se transforma em uma rede de nós interconectados. Não há nenhum componente vertical necessário para um diagrama de rede; ele pode ser girado à vontade e as conexões permanecem. Se a TLG é realmente muito difundida ao longo da vida, como parece fora de dúvida, o conceito de árvore da vida universal torna-se uma questão de preferência filosófica, não de demonstração empírica.

Como os organismos compartilham informações genéticas? Para procariotos, é simples: eles rotineiramente compartilham plasmídeos (é assim que os genes de resistência a antibióticos podem viajar de espécie para espécie). Esse fenômeno deu origem ao conceito de “quase-espécie”, em que indivíduos dentro de uma espécie podem não ter todo o repertório de genes, mas podem obtê-los de outros membros quando estão sob estresse. Para organismos superiores, outros métodos de transferência de informação incluem fagos e elementos genéticos móveis (“genes saltadores” ou transposons), hibridização e introgressão. Microbiologistas estão estudando canais nanoscópicos que parecem conectar células, através dos quais as informações podem viajar. Nesse caso, as células tornam-se menos como edifícios individuais e mais como praças comerciais com passarelas entre si.

Um entrave ao avanço científico

O antigo conceito de árvore pode atrapalhar o progresso científico, dizem os autores.

"A transferência lateral de genes não respeita os limites das espécies e é ativada por elementos genéticos móveis e seus veículos não incluídos na árvore da vida, como vírus, agentes de transferência de genes, plasmídeos e transposons ... Além disso, embora permita conexões laterais, a árvore da vida reconhece apenas uma maneira "certa" de agrupar táxons existentes: descendência vertical. Portanto, está mal equipado para estudar agrupamentos de espécies que refletem a complexa dinâmica de transferência de genes que existem no mundo microbiano.

As redes, por outro lado, não são restritas por uma estrutura de árvore e podem ser usadas para lançar uma nova luz sobre questões evolutivas. Na verdade, estudos recentes descobriram que as redes podem superar as árvores quando confrontadas com cenários filogenéticos complexos ou ambíguos."

As “questões evolutivas” no novo paradigma, se não forem verticais, dificilmente podem ser chamadas de evolucionárias no sentido darwiniano. A questão agora é se os limites das hierarquias aninhadas pelas quais os organismos foram classificados são tão impenetráveis quanto se acreditava anteriormente. As implicações do pensamento em rede ainda precisam ser totalmente exploradas, mas as perspectivas são tão empolgantes quanto revolucionárias.

Implicações para o Design Inteligente

Se o conceito de rede continuar a suplantar ou suplementar o antigo conceito de árvore, aqui estão algumas questões de pesquisa que os defensores do design podem considerar:

- A primazia da informação sobre a ancestralidade.

- A habilidade da TLG de preparar um organismo em migração para um novo ambiente.

- Adaptação à luz da TLG, em vez da ancestralidade.

- Como a rede fornece resiliência.

- Novas explicações para “evolução convergente” - compartilhamento em vez de ancestralidade.

- Princípios taxonômicos expandidos que incluem a TLG.

- Limites para o compartilhamento de informações que preservam a identidade das espécies.

- Interpretando o registro fóssil à luz da genômica em rede.

- Substituindo árvores filogenéticas por diagramas de rede.

Vale a pena ler o ensaio de Blais e Archibald, “The past, present and future of the tree of life”. Podemos estar à beira de uma grande revolução científica na biologia. Parece que a nova genômica será mais compatível com o design do que o modelo de Darwin jamais foi.

O Discovery Institute está co-patrocinando um evento esta semana no Texas, a “Conference on Engineering in Living Systems” (CELS). Os participantes provavelmente irão discutir alguns dos conceitos que vêm à tona na nova genômica e como eles se cruzam com os princípios de engenharia evidentes na vida. O que é mais projetado do que uma rede?